Lanzadera de lactato. Combustible, precursor de glucosa y señal

Actualizado: 6 oct
En el podcast hablamos de qué es el lactato y quedó pendiente desarrollarlo con datos. Durante décadas se lo trató como un producto de la falta de oxígeno y como el responsable de la fatiga. Hoy hay evidencia sólida de que es un combustible, el principal precursor de la glucosa que fabrica el hígado y una señal entre tejidos. La idea que ordena todo eso es la lanzadera de lactato que propuso George Brooks en los años 80.
Formación de lactato
En la glucólisis, cada molécula de glucosa se parte en dos de piruvato. El piruvato tiene dos caminos, entrar a la mitocondria para oxidarse o convertirse en lactato por la enzima lactato deshidrogenasa (LDH). Esa conversión pasa todo el tiempo, también en reposo y con oxígeno disponible, y se acelera cuando la glucólisis va más rápido de lo que la mitocondria puede procesar el piruvato. Al formarse lactato se regenera NAD⁺, que la glucólisis necesita para seguir funcionando, y se consume un protón.
Ese último detalle choca con la idea del ácido láctico como causa de la acidez. Según Robergs, Ghiasvand & Parker (2004), los protones del ejercicio intenso vienen sobre todo de la hidrólisis del ATP y de reacciones de la glucólisis, y la formación de lactato, al consumir un protón, frena la acidosis. La fatiga, a su vez, depende de muchos factores, como el fosfato inorgánico, los protones, el potasio fuera de la célula, el glucógeno disponible y el sistema nervioso central.
Lanzadera entre células
Brooks (1986) planteó que el lactato que se forma en un tejido se usa en otro. Sale de fibras con mucha actividad glucolítica a través de transportadores de membrana (MCT, sobre todo MCT4), pasa a fibras vecinas o a la sangre y entra por MCT1 a tejidos con mucha capacidad oxidativa, como las fibras de tipo I, el corazón y el cerebro. Ahí vuelve a convertirse en piruvato y se oxida en la mitocondria. Otra parte llega al hígado y al riñón, donde se usa para fabricar glucosa nueva, lo que se llama gluconeogénesis, y esa glucosa vuelve a la sangre.

Datos con isótopos
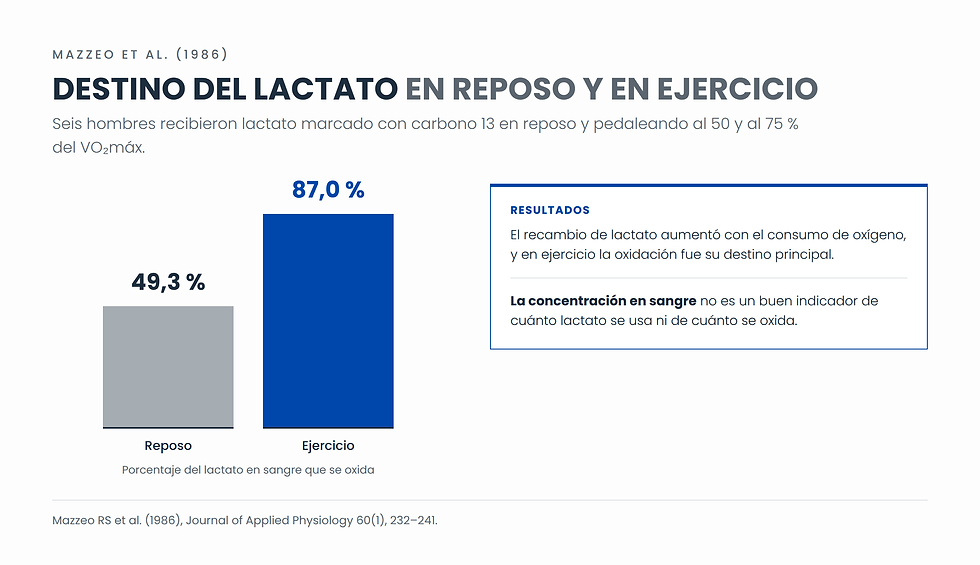
La lanzadera se apoya en estudios con isótopos, que permiten seguir hacia dónde va una molécula marcada. Mazzeo y colaboradores (1986) inyectaron lactato marcado con carbono 13 a 6 hombres en reposo y pedaleando al 50 y al 75 % del VO₂máx. En reposo se oxidaba el 49,3 % del lactato que pasaba por la sangre, y durante el ejercicio el 87,0 %. El recambio de lactato aumentaba con el consumo de oxígeno, y los autores remarcaron algo que me parece muy importante para leer un test, la concentración de lactato en sangre no es un buen indicador de cuánto lactato se está usando ni de cuánto se oxida.
Con estos datos, Brooks (1986) estimó que en ejercicio estable al menos un 75 % del lactato se oxida y alrededor de un 20 % se convierte en glucosa. Y el entrenamiento cambia ese reparto. Bergman y colaboradores (2000) entrenaron a 9 hombres durante 9 semanas y, después del entrenamiento, la glucosa fabricada a partir de lactato se duplicó en reposo y casi se triplicó durante el ejercicio.
En ratones, Hui y colaboradores (2017) encontraron que el recambio de lactato en sangre supera al de glucosa, 1,1 veces con los animales alimentados y 2,5 veces en ayunas, y que en la mayoría de los tejidos el lactato es la principal vía por la que el carbono de la glucosa llega al ciclo de Krebs. Son datos en animales, pero van en la misma dirección.
Lactato como señal
En sus revisiones más recientes, Brooks (2018, 2020) y Brooks y colaboradores (2022) describen al lactato también como una molécula señal. Se une al receptor HCAR1 de los adipocitos y frena la liberación de grasa, participa en la regulación de genes a través de la lactilación de histonas y se lo relaciona con adaptaciones mitocondriales. Gran parte de esta evidencia viene de células y de animales, y la considero una línea de investigación con mucho interés, todavía lejos de una aplicación directa al entrenamiento.
Lanzadera dentro de la célula
Brooks también propuso una lanzadera intracelular, en la que el lactato se oxidaría directamente en la mitocondria gracias a un complejo con MCT1 y LDH en su membrana. Hashimoto, Hussien & Brooks (2006) encontraron esos componentes juntos en células musculares en cultivo, mientras que Sahlin y colaboradores (2002) no encontraron evidencia de oxidación de lactato en mitocondrias de músculo de rata. Esa parte de la teoría sigue en discusión.
LT1 y LT2
Si el lactato se forma y se usa todo el tiempo, la concentración en sangre muestra el balance entre lo que aparece y lo que se usa. LT1 marca el primer aumento sostenido sobre los valores de reposo. LT2 marca la intensidad a partir de la cual la producción supera la capacidad de oxidarlo y la concentración ya no se estabiliza. Los dos son constructos teóricos que delimitan hitos fisiológicos, y la transición entre un dominio y otro es gradual. Los 4 mmol/L que todavía se usan como referencia vienen de los trabajos de Mader y Heck, y en muchas personas no coinciden con su LT2.
Aplicación práctica
Lo que puedo concluir es que el lactato es parte del metabolismo energético normal, con evidencia sólida para su papel como combustible y precursor de glucosa, y evidencia más preliminar para su papel como señal.
El entrenamiento aumenta la capacidad de oxidar lactato, con más mitocondrias y más transportadores. Por eso LT1 y LT2 se corren a intensidades más altas cuando el atleta mejora.
Después de un esfuerzo intenso, la concentración vuelve a valores de reposo en minutos a una hora, en gran parte porque se oxida, y más rápido si seguís moviéndote suave. El dolor muscular de los días siguientes viene del daño en las fibras y no tiene relación con el lactato.
En un test mirá la curva completa, junto con la potencia o la velocidad en LT1 y LT2. Un valor aislado de lactato dice poco.
Cuando alguien habla de tolerar el lactato, en realidad habla de tolerar la fatiga de esa intensidad, que tiene muchos componentes.
Limitaciones
Los estudios con isótopos tienen muestras chicas, de 6 a 9 personas en los trabajos citados.
La función del lactato como señal se apoya sobre todo en estudios en células y en animales.
La lanzadera intracelular sigue sin consenso.
Referencias
Brooks GA (1986). The lactate shuttle during exercise and recovery. Medicine & Science in Sports & Exercise, 18(3), 360–368. https://doi.org/10.1249/00005768-198606000-00019
Mazzeo RS, Brooks GA, Schoeller DA, Budinger TF (1986). Disposal of blood [1-13C]lactate in humans during rest and exercise. Journal of Applied Physiology, 60(1), 232–241. https://doi.org/10.1152/jappl.1986.60.1.232
Robergs RA, Ghiasvand F, Parker D (2004). Biochemistry of exercise-induced metabolic acidosis. American Journal of Physiology, Regulatory, Integrative and Comparative Physiology, 287(3), R502–R516. https://doi.org/10.1152/ajpregu.00114.2004
Bergman BC, Horning MA, Casazza GA, et al. (2000). Endurance training increases gluconeogenesis during rest and exercise in men. American Journal of Physiology, Endocrinology and Metabolism, 278(2), E244–E251. https://doi.org/10.1152/ajpendo.2000.278.2.E244
Hui S, Ghergurovich JM, Morscher RJ, et al. (2017). Glucose feeds the TCA cycle via circulating lactate. Nature, 551(7678), 115–118. https://doi.org/10.1038/nature24057
Brooks GA (2018). The science and translation of lactate shuttle theory. Cell Metabolism, 27(4), 757–785. https://doi.org/10.1016/j.cmet.2018.03.008
Brooks GA (2020). Lactate as a fulcrum of metabolism. Redox Biology, 35, 101454. https://doi.org/10.1016/j.redox.2020.101454
Brooks GA, Arevalo JA, Osmond AD, et al. (2022). Lactate in contemporary biology. A phoenix risen. Journal of Physiology, 600(5), 1229–1251. https://doi.org/10.1113/JP280955
Hashimoto T, Hussien R, Brooks GA (2006). Colocalization of MCT1, CD147, and LDH in mitochondrial inner membrane of L6 muscle cells. Evidence of a mitochondrial lactate oxidation complex. American Journal of Physiology, Endocrinology and Metabolism, 290(6), E1237–E1244. https://doi.org/10.1152/ajpendo.00594.2005
Sahlin K, Fernström M, Svensson M, Tonkonogi M (2002). No evidence of an intracellular lactate shuttle in rat skeletal muscle. Journal of Physiology, 541(Pt 2), 569–574. https://doi.org/10.1113/jphysiol.2002.016683


Comentarios